黄精,是传承千年的药食两用植物,也曾被用作代粮。然而,与依靠淀粉储存碳水化合物的稻米、小麦等作物不同,多花黄精根状茎中积累的主要储藏物质是具备高度分支的Agavin型果聚糖。同样是植物的储藏器官,黄精根茎为何“淀粉缺失但富含果聚糖”?这些复杂的果聚糖又是如何合成的?
近日,浙江农林大学森林食物资源挖掘与利用全国重点实验室斯金平教授联合武汉大学朱玉贤院士、新加坡国立大学俞皓院士等团队,在Plant Communications发表题为“A haplotype-resolved genome reveals intron expansion and enzyme innovation associated with the starch-to-fructan shift in Polygonatum cyrtonema”的研究论文。研究整合单倍型分辨基因组、群体重测序、转录组、DNA甲基化及体外酶学分析,从基因组结构、基因表达和酶功能等层面,为理解多花黄精独特的碳水化合物储藏策略提供了新证据。
研究背景
从“以淀粉为主”到“以果聚糖为主”,黄精走出了一条怎样的特异储碳路径?
淀粉是许多粮食作物的重要储藏物质,而多花黄精根状茎中的果聚糖含量可超过干重的50%。其中,Agavin果聚糖具有由β(2→1)和β(2→6)糖苷键共同构成的复杂分支结构,与典型的线性菊粉有所不同。这一特点提出了两个相互关联的科学问题:一方面,多花黄精为何没有像常见粮食作物那样大量积累淀粉?另一方面,其高度分支的果聚糖结构由哪些酶催化形成?此前,有限的基因组资源,以及仅凭序列同源性难以准确判定的果糖基转移酶功能,使这些问题尚缺乏系统解释。
研究内容
1. 解析单倍型巨型基因组,揭示转座元件的大规模积累
多花黄精为二倍体植物(2n = 22),研究团队构建了染色体水平的单倍型分辨基因组,获得长度分别约为7.18 Gb和7.05 Gb的两套单倍型序列。其中组装的全套基因组contig N50达到4.93 Mb,98.94%的序列被锚定到染色体,组装BUSCO完整度为99.80%。研究共注释到77,683个蛋白编码基因,其中单倍型A和B分别包含38,043和37,399个。共线性和同义替换率(Ks)分析支持多花黄精经历了两次全基因组复制,其中较近的一次发生在黄精属与龙血树属分化之前。多花黄精基因组扩张主要与转座元件积累有关:转座元件占单倍型A组装的91.46%,约6.57 Gb;LTR反转录转座子占组装的80.04%。其中,Gypsy超家族贡献约4.83 Gb,显著高于比较的近缘物种。完整LTR元件的插入时间分析还揭示了约0.11百万年前的近期活跃高峰,表明重复序列的持续积累是理解多花黄精巨型基因组的重要线索。
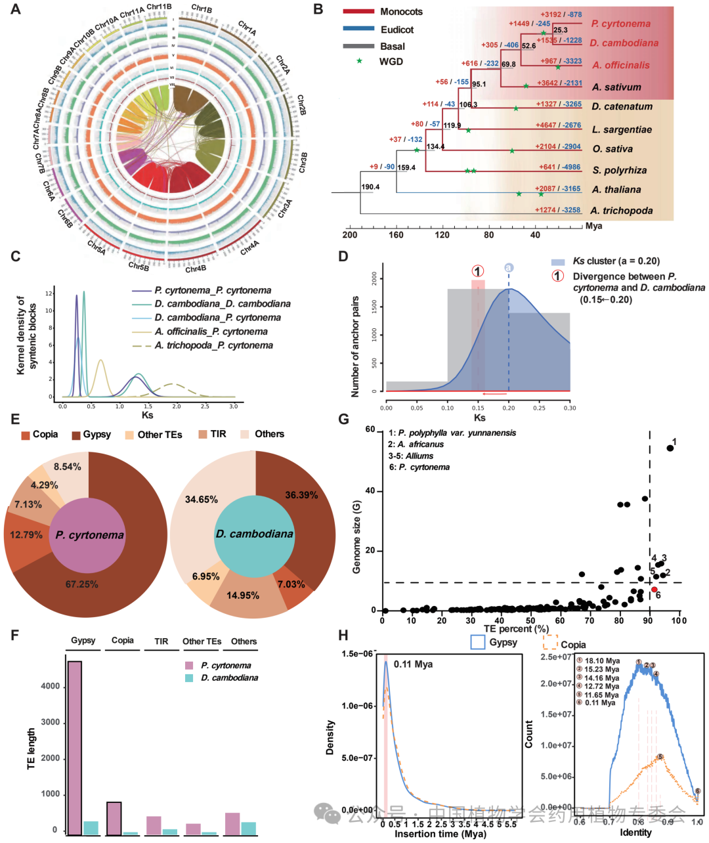
图1 多花黄精基因组演化与扩张机制
2. 基因内含子显著扩张,与基因表达及甲基化变化相关
与591种被子植物的比较显示,多花黄精具有突出的基因内含子扩张特征。Gypsy和Copia等LTR反转录转座元件是其中的重要组成,在最长内含子组中,LTR元件贡献约40%的序列长度。对31,094个含内含子基因进行分段回归,在每个基因的内含子总长度约15.40 kb处识别到最佳拟合的斜率转折点:较短区间内,表达与内含子长度呈正相关;超过这一范围后,整体转为较弱、渐进的下降趋势。DNA甲基化分析比较了内含子长度为5–10 kb与超过50 kb的基因组别,发现长内含子组具有更高的CG、CHG和CHH甲基化水平。在17个淀粉相关基因内部,含TE的内含子区域与非TE区域配对比较,在种子和根状茎中均观察到前者的甲基化水平更高。两条储碳通路呈现出不同的结构特征:单倍型A中17个淀粉相关基因的基因区TE总长度平均为28.47 kb,而15个果聚糖相关基因平均为1.08 kb。结合表达数据,这些结果建立了“TE富集的内含子结构、高甲基化与低表达共现”的关联图景。
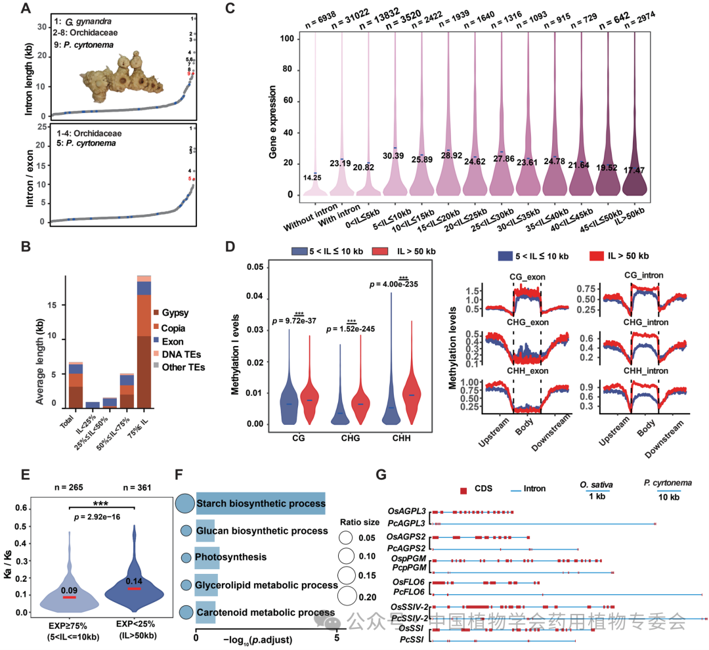
图2 内含子扩张及其与表达和甲基化的关系
3. 淀粉积累不足,并非合成通路的简单缺失
与淀粉占比约75%的水稻籽粒不同,多花黄精根状茎以果聚糖为主要储藏物质,且未出现淀粉碘染色;种子虽然碘染色呈阳性,但淀粉含量低于定量方法的检测限(0.18 g/100 g)。在15种被子植物的比较中,研究统计到多花黄精保留17个淀粉合成相关基因,少于所比较高淀粉作物的24–68个。其淀粉通路并未整体缺失,而是表现出较少的基因拷贝与显著的结构差异。这些淀粉相关基因的平均内含子总长度约61 kb,约为所比较谷类作物的6-10倍;部分基因座包含22-76个TE元件,基因结构明显长于水稻同源基因。表达分析显示,AGPS2、AGPL3等核心基因在多花黄精种子中的表达不足水稻相应基因的1%,在根状茎中的转录本丰度也很低。以PcAGPS2和PcAGPL1为代表,RNA-seq与甲基化轨迹展示了TE富集内含子区域、高甲基化与低转录本丰度的空间共现。与此同时,AGPS/AGPL异源表达和功能检测表明,部分PcAGPL组合的功能活性降低。上述结果从基因组结构、转录和蛋白功能多个层面支持淀粉合成能力减弱的解释。
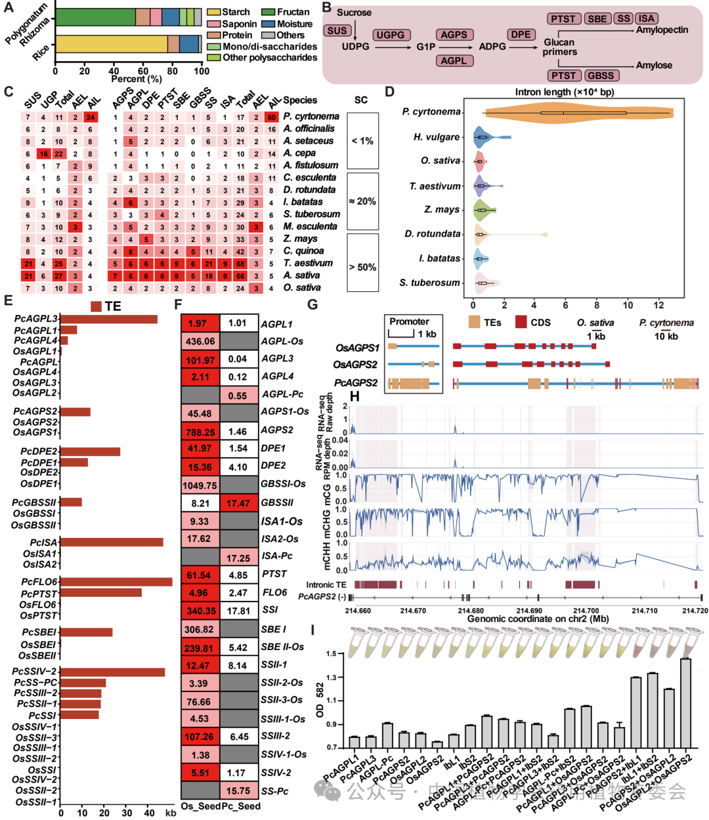
图3 多花黄精淀粉贫乏表型的多层次证据
4. 群体基因组分析定位果聚糖相关位点,为候选基因簇提供证据
研究团队对261份黄精属材料开展重测序,结合系统发育、ADMIXTURE和主成分分析,识别出七个主要遗传谱系。多花黄精进一步分为PC1、PC2和PC3三个地理亚群,群体结构分析在K = 7时获得最低交叉验证误差0.1525。分布与演化分析支持黄精属从西南山地向东部山地扩展、并在不连续生境中发生区域分化的历史。在代谢物层面,研究对四类黄精属材料共234份样本测定1-kestose、nystose和fructosylnystose三种果聚糖相关寡糖。GWAS使用134份多花黄精材料及6,726,244个SNP,鉴定到2号显著关联的SNP标记chr2:864107472,区间包含果聚糖合成基因簇PC2G03392–PC2G03396。这一结果为该区域参与果聚糖相关性状变异提供了遗传关联证据,也为后续候选基因功能验证提供了方向。
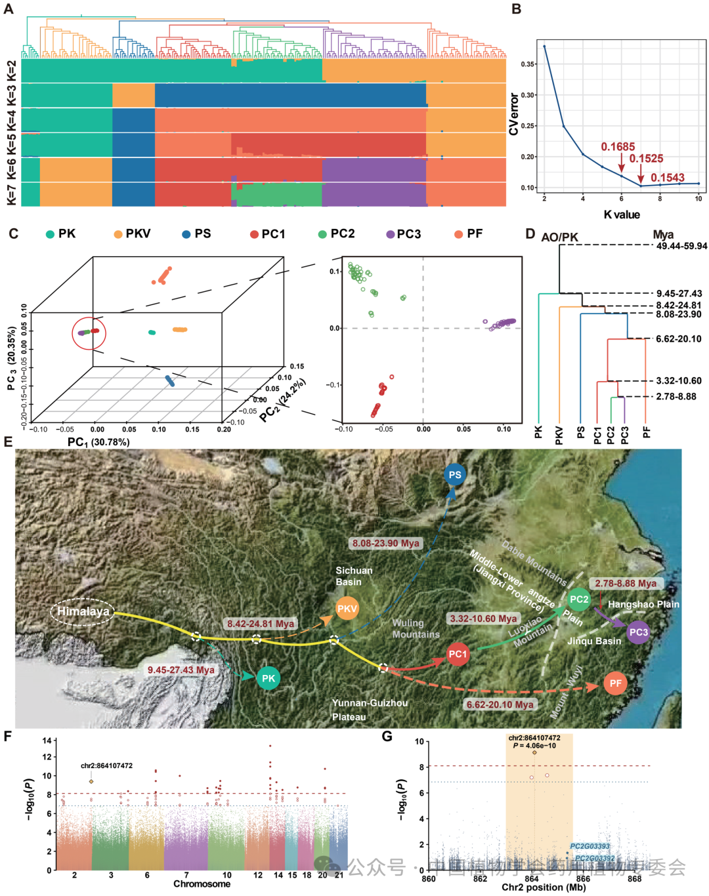
图4 黄精属群体分化与果聚糖相关性状的遗传关联
5. 鉴定Pc6SFTL,揭示复杂果聚糖分支形成的关键酶学线索
果聚糖合成相关基因的扩展和功能分化,则为“为什么能够积累复杂果聚糖”提供关键证据。研究比较了93种被子植物的果聚糖相关基因,发现天门冬科具有包含1-SST、1-FFT和6G-FFT等成员的基因簇。结合共线性与复制方式分析,团队提出多花黄精经历祖先全基因组复制、后续片段复制及局部重排,形成了2号染色体核心基因簇与18号染色体两个相关模块的布局。这些变化为果糖基转移酶的保留与功能分化提供了遗传基础。在功能鉴定中,研究通过异源表达、体外反应及HPAEC-PAD分析酶反应产物。P182451除主要的1-SST活性外,还表现出辅助的6-SST和1-FFT活性,能够以蔗糖为底物形成1-kestose、6-kestose和nystose,显示出同一酶参与多种果糖基转移反应的能力。最重要的发现是,Pc6SFTL(P023394)具有6-SFT样活性。该蛋白在系统发育与序列同源性分析中被归入6G-FFT相关成员,但实验显示,它能够利用蔗糖和1-kestose生成分支四糖bifurcose;结合空载体及已知6-SFT对照的产物色谱,研究为这一分支反应提供了直接的体外生化证据。该发现补充了仅凭传统1-SST、1-FFT和6G-FFT功能难以解释的分支形成步骤,为Agavin果聚糖的生物合成模型提供了关键酶学线索。这一发现说明,序列相似的酶未必具有完全相同的催化功能,也体现了实验验证对代谢通路重建的重要性。
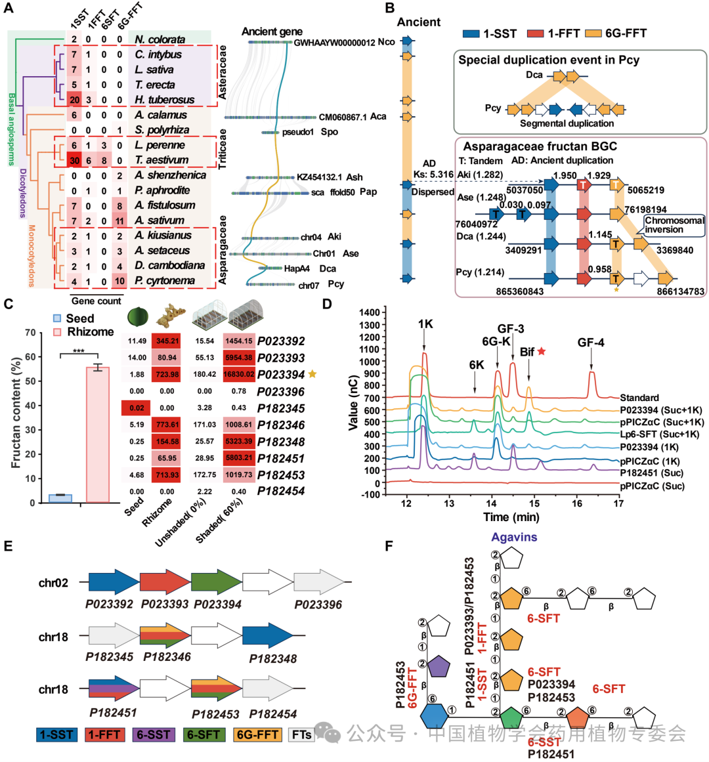
图5 果聚糖基因簇的演化与功能分化
研究总结
黄精根茎为何“淀粉缺失、富含果聚糖”?这项研究提出的解释不是一个简单的代谢“开关”,而是多层次变化共同构成的证据框架:淀粉通路表现出较少的基因拷贝、富含转座元件的内含子结构、较低表达及部分蛋白活性变化;与此同时,果聚糖相关基因经历复制与功能分化,Pc6SFTL则提供了分支结构形成的关键酶学线索。
该研究既提供了多花黄精的高质量基因组资源,也为果聚糖相关性状研究、种质资源评价及关键酶元件挖掘提供了候选对象。未来,通过植物体内功能验证和性状改良试验,有望进一步明确这些基因与酶在黄精品质形成中的作用,为探索多样化的植物碳水化合物积累与林下栽培提供科学依据。
武汉大学高等研究院朱玉贤院士、浙江农林大学森林食物资源挖掘与利用全国重点实验室斯金平教授和陈东红教授、新加坡国立大学理学院生物科学系俞皓院士为该论文的共同通讯作者,浙江农林大学林学院(生命科学学院)韩之刚副教授、石艳博士和刘京晶副教授为共同第一作者。中国科学院遗传与发育生物学研究所黄盖副研究员、海军军医大学药学院张磊教授、浙江农林大学林学院(生命科学学院)吴文武教授等参与了部分工作。该研究得到国家重点研发计划(2022YFD2200600)和森林食物资源挖掘与利用全国重点实验室自主研发项目等资助。
论文链接:
https://www.sciencedirect.com/science/article/pii/S2590346226004360
